
У матеріалі
6 розд.Чому фенілаланін був майже «сліпою плямою» для керованої хімії
Bioorthogonal chemistry працює на красивій ідеї: запустити реакцію всередині живої системи так, щоб вона не переплутала нашу мішень із тисячами інших молекул. За останні два десятиліття ця галузь навчилася робити надзвичайно точні речі — ставити мітки на білки, активувати молекули у потрібний момент, знімати захисні групи просто в клітині. Але більшість таких реакцій любить функціональні групи з киснем, азотом, сіркою чи іншими гетероатомами. Вони дають хіміку точку, за яку можна “вхопитися”. У фенілаланіну такої розкоші майже немає: ароматичне кільце гідрофобне, хімічно вперте й водночас дуже важливе для структури білків.
Це принципово, бо фенілаланін — не декоративна амінокислота. Його ароматичне кільце бере участь у π–π та cation–π взаємодіях, допомагає формувати гідрофобні поверхні білків, впливає на зв’язування партнерів і самоорганізацію пептидів. У багатьох білкових інтерфейсах одна ароматична бічна група може бути різницею між “партнери впізнали один одного” і “контакт розсипався”. Тому можливість тимчасово вимкнути саме цей елемент — це не просто новий protecting group, а інструмент для постановки причинного експерименту: що станеться, якщо конкретна Phe перестане працювати, а потім ми повернемо її назад у задану секунду?
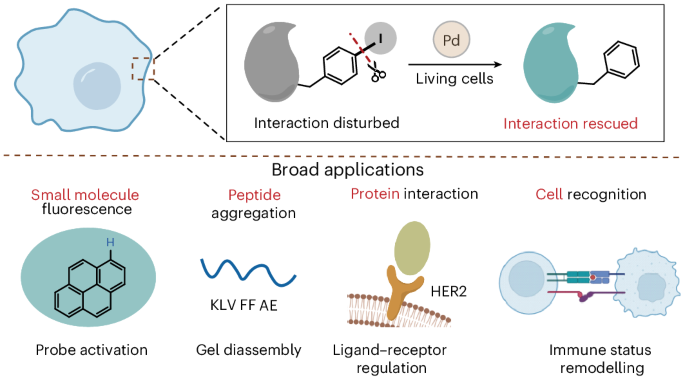
Проблема в тому, що традиційні caging-підходи погано лягають на чисто вуглеводневу бокову групу. Автори роботи систематично перевіряли кілька екзогенних гетероатомних стратегій — з O, N, B та I — і врешті зупинилися на йоді як на “тимчасовому якорі”. Йодована версія фенілаланіну достатньо сильно змінює властивості ароматичного кільця, щоб порушити потрібну взаємодію, але водночас цей атом можна прибрати так, щоб після реакції залишився звичайний фенілаланін без хімічного шраму. Саме traceless character тут критичний: система повертається не до “майже того самого” стану, а до вихідної амінокислоти.
Це також пояснює, чому в роботі з’явився паладій. Метал-каталізовані decaging reactions у живих системах не нові самі по собі: palladium-mediated intracellular chemistry розвивається вже багато років. Новизна цієї роботи в іншому — у тому, що metal-triggered bond cleavage застосували до настільки хімічно незручної й біологічно універсальної групи, як Phe. Тобто автори не просто додали ще один трюк до toolbox; вони розширили сам тип біомолекулярних взаємодій, якими можна керувати хімічно.
Від флуорофора до поверхні пухлинної клітини
Сильна сторона paper — послідовність демонстрацій. Спочатку автори показують базову логіку на малих системах: iodine-caging вимикає потрібну властивість, Pd-triggered decaging її повертає. Потім вони переходять до пептидів, де фенілаланін часто є частиною мотивів, що тримають самоорганізацію. Після decaging змінюється поведінка агрегатів і гелів. Це вже важливо для supramolecular chemistry, бо дозволяє не просто спостерігати assembly, а запускати його або руйнувати у потрібний момент зовнішнім хімічним сигналом.
Далі стає цікавіше: команда використала genetic code expansion, щоб site-specifically вставити iodinated phenylalanine у HER2-targeting affibody. Affibody — компактний білковий binder, який можна налаштувати на конкретну мішень; у цьому випадку — на HER2, відомий поверхневий рецептор, важливий для частини пухлин. Коли ключова фенілаланінова взаємодія “закрита”, ligand–receptor binding слабшає. Після Pd-decaging ароматична група повертається, і контакт відновлюється. Це дуже чистий приклад того, як органічна реакція стає перемикачем для білкового інтерфейсу на поверхні живої клітини.
Ще сильніший експеримент стосується імунного розпізнавання. Автори змінили antigenic peptide так, щоб його імуногенність залежала від стану фенілаланіну, і показали temporally controlled reshaping of tumour–T cell engagement. Формулювати це треба обережно: робота не демонструє готову терапію і не означає, що паладієм завтра “вмикатимуть” T-клітини у пацієнтів. Але як proof of principle це сильна річ — хімічна реакція може змінити не лише світіння probe чи конформацію маленького пептиду, а реальну міжклітинну подію.
І це, мабуть, найцікавіший conceptual jump. Chemical biology часто починається з молекули і закінчується молекулою: поставили tag, побачили fluorescence, зробили imaging. Тут ланцюжок довший: зміна одного atom-level chemical handle → відновлення phenylalanine side chain → зміна protein interface → зміна cell recognition. Тобто reaction design простягається через кілька рівнів організації біології. Для хіміка це особливо приємна історія, бо показує, що селективність реакції врешті може проявитися на рівні поведінки клітини.
Що ця робота реально відкриває — і де поки не треба перебільшувати
Найближче практичне застосування такого підходу — не “ліки з паладієм”, а дослідницькі інструменти. Якщо конкретний фенілаланін стоїть у центрі protein–protein interaction, receptor binding або peptide assembly, тепер з’являється спосіб включити його функцію у заданий момент. Це корисно для time-resolved biology: можна не просто порівнювати дві мутантні клітини, а спостерігати, як система перебудовується секунди й хвилини після відновлення однієї взаємодії.
Другий напрям — більш загальна ідея керування неполярними групами. Автори самі підкреслюють, що їхня стратегія стосується функціонально важливих nonpolar motifs, які традиційно були складними мішенями для bioorthogonal manipulation. Якщо логіку haloatom-assisted caging вдасться узагальнити, toolbox chemical biology може вийти за межі “зручних” амінокислот із очевидними реакційними центрами. Це важливо, бо гідрофобні контакти — фундаментальна частина білкової структури, мембранних взаємодій і молекулярного розпізнавання.
Але обмеження теж реальні. Будь-яка metal-mediated chemistry у living systems ставить питання токсичності, доставки каталізатора, локальної концентрації, competing ligands і того, наскільки добре реакція працює не в оптимізованій клітинній системі, а в складній тканині чи організмі. Крім того, genetic code expansion — потужний, але спеціалізований інструмент. Він чудово підходить для mechanistic biology, проте сам по собі не є простим шляхом до клінічного застосування.
Тому найкращий спосіб читати цю роботу — не як “паладій лікуватиме рак”, а як розширення граматики, якою хіміки можуть розмовляти з живими системами. Раніше фенілаланін був майже пасивною літерою: його можна було замінити мутацією, але важко було динамічно вимкнути й повернути без сліду. Тепер з’явився хімічний перемикач. І якщо цей принцип переживе масштабування на інші білки, інші nonpolar residues та складніші моделі, він може стати одним із тих інструментів, які через кілька років здаватимуться очевидними — хоча сьогодні вони виглядають майже неприродно точними.
Фенілаланін довго був незручним об’єктом для динамічного керування в живих системах: його боковий ланцюг неполярний і майже не має стандартних “ручок” для bioorthogonal chemistry.
- Йод використали як тимчасову caging-групу на ароматичній бічній групі Phe.
- Palladium-triggered reaction безслідно відновлює звичайний phenylalanine.
- Підхід перевірили на fluorescence, peptide disassembly та protein–protein interactions.
- За допомогою genetic code expansion iodinated Phe вставили в HER2-targeting affibody.
- У tumour-cell model decaging дозволяв змінювати antigenic recognition T-клітинами.
Від молекули до клітини
Автори систематично оцінювали O-, N-, B- та I-based strategies.
Йод на aromatic side chain дає контрольовану Pd-triggered dehalogenation.
Paper проходить від reaction design до experiments усередині living cells.
Робота вийшла в Nature Chemistry.
Чому це не просто ще один protecting group
| Рівень | Звичайний підхід | Що додає ця робота |
|---|---|---|
| Молекула | Статичний analog або mutation | Reversible-on-demand control через decaging |
| Білок | Порівняння mutant vs wild type | Time-resolved restoration конкретної interaction |
| Клітина | Мітка або readout | Керування ligand–receptor і cell–cell recognition |
| Хімічна мішень | Переважно heteroatom-rich groups | Неполярна aromatic side chain Phe |
Питання, які виникають після paper
Це вже терапія?
Чому саме паладій?
Що тут найважливіше для хіміка?
Джерела та перевірка
- Nature ChemistryPalladium-triggered bioorthogonal phenylalanine decaging
- Nature ChemistryGenetically encoded bioorthogonal tryptophan decaging in living cells
- Nature ChemistryPalladium-triggered deprotection chemistry for protein activation in living cells

Коментарі0 коментарів
Коментарі